Estruturas de crio-EM de uma bomba de efluxo bacteriana e de um canal exclusivo de fungos mostram como diferenciar baixa permeabilidade de expulsão ativa de um candidato a fármaco.
Um composto candidato a um medicamento pode passar por toda a triagem inicial (fase exploratória e in vitro), apresentando potência dentro do esperado, seletividade aceitável e citotoxicidade sob controle. No entanto, é comum que, nos ensaios in vivo, o efeito simplesmente não apareça.
A primeira hipótese costuma ser a permeabilidade: a molécula não está passando pelas barreiras. Existe, porém, uma segunda possibilidade, mais difícil de provar sem a ferramenta certa. A molécula entra, sim, mas é reconhecida e expulsa por um transportador de membrana antes de agir. A resolução desse desafio é complexa, porque um pede reformulação química da molécula e o outro pede um inibidor de efluxo administrado em conjunto, ou até a troca completa de alvo.
Durante décadas, responder a essa pergunta com precisão ainda nos ensaios de fase in vitro foi praticamente impossível. Transportadores e canais de membrana são difíceis de serem analisados por cristalografia de raios X, o método que por muito tempo foi a via mais confiável para ver uma proteína em detalhe atômico. Proteínas de membrana raramente formam os cristais ordenados que a técnica exige e costumam se desestabilizar durante a purificação. Sem estrutura, sobra apenas inferência: modelos indiretos, comparação com proteínas homólogas e tentativa e erro em bancada.
Ver o que só se podia supor
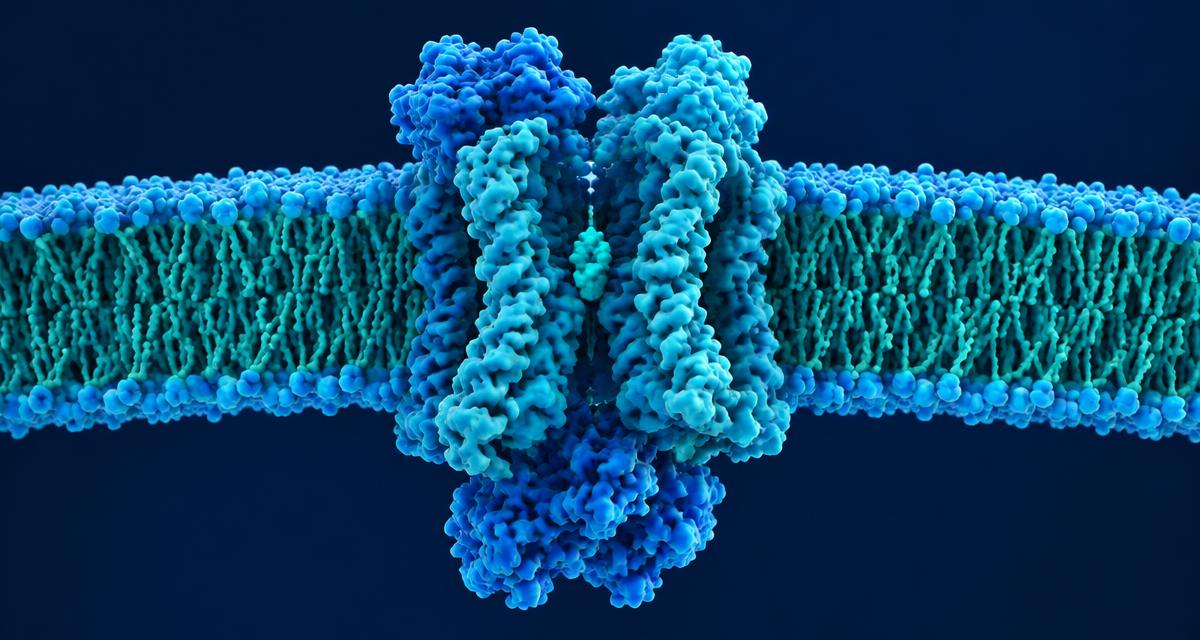
A criomicroscopia eletrônica muda essa equação. A amostra é congelada em frações de milissegundo, em um estado e conformação próximos do que existe dentro da célula viva, e a estrutura tridimensional é reconstruída a partir de milhares de imagens individuais de partículas, capturadas por um microscópio eletrônico. Não há necessidade de cristalizar nada. Quando a resolução chega à faixa de 2 a 3 ångströns, o resultado permite localizar, átomo por átomo, o caminho que uma molécula percorre dentro de um canal, o ponto exato onde ela se encaixa e o movimento que abre ou fecha a passagem. Dois exemplos recentes mostram bem o alcance disso, um em bactéria e outro em fungo, publicados entre o fim de 2025 e o início de 2026.
TMexCD1-TOprJ1, bomba de efluxo de tigeciclina em Klebsiella pneumoniae
TOK1, canal de potássio exclusivo de fungos, em Candida albicans
A bomba que se recusa a soltar o antibiótico
Em novembro de 2025, um grupo de pesquisadores publicou na Nature Communications a estrutura por crio-EM da TMexCD1-TOprJ1, bomba de efluxo tripartida identificada originalmente em Klebsiella pneumoniae. Essa bomba expulsa ativamente a tigeciclina, antibiótico reservado como último recurso contra infecções multirresistentes, e o problema não fica restrito a essa bactéria: o gene que codifica a maquinaria vive em plasmídeos móveis, capazes de circular entre diferentes patógenos do grupo ESKAPE, a lista de bactérias que mais preocupa a vigilância sanitária global. Quando essa resistência aparece ao lado de outros mecanismos, como o gene MCR-1, associado à resistência à colistina, a combinação reduz ainda mais as opções terapêuticas disponíveis.
A estrutura, resolvida a 2,97 ångströns, revelou uma arquitetura simétrica pouco comum, com três cópias da proteína TOprJ1 na membrana externa, seis da TMexC1 e três da TMexD1, formando um conjunto alongado que atravessa as duas membranas da bactéria como um duto contínuo. O contato entre o adaptador TMexC1 e o poro TOprJ1, do tipo ponta a ponta, e a cavidade onde o antibiótico se liga antes de ser bombeado para fora, estão agora mapeados com precisão suficiente para orientar o desenho de moléculas capazes de bloquear especificamente esse encaixe, sem interferir em outras bombas da célula.
Um canal sem paralelo em humanos
O segundo exemplo é de outra natureza, mas conversa com a mesma lógica. Em abril de 2026, a Nature Communications publicou a estrutura do TOK1, canal de potássio exclusivo de fungos, presente em Candida albicans, o patógeno fúngico mais comum em infecções humanas. TOK1 regula o equilíbrio de potássio da célula fúngica sob estresse, sustentando a pressão interna que a célula precisa manter para colonizar o hospedeiro, e não tem homólogo claro entre os canais de potássio humanos.
A estrutura, obtida a 2,6 ångströns, mostrou oito hélices transmembrana organizadas de um jeito distinto dos canais de mamíferos já descritos, um domínio batizado de TALC que funciona como sensor de pH externo e lembra subunidades auxiliares encontradas em neurônios, e um mecanismo de abertura que depende de um movimento helicoidal travado em um único aminoácido, a alanina na posição 471. A seletividade por íons de potássio também chamou atenção: em vez dos quatro sítios de coordenação clássicos presentes na maioria dos canais desse tipo, o TOK1 usa apenas três. É justamente esse tipo de diferença estrutural, distante da biologia humana, que costuma interessar quem procura um novo alvo antifúngico com menor risco de efeito colateral sobre canais iônicos humanos.
O que muda na prática de quem desenvolve
Nenhuma dessas estruturas resolve, isoladamente, um problema de desenvolvimento de fármaco. Seu valor está em aproximar duas dimensões que nem sempre conseguem conversar: o comportamento observado nos ensaios biológicos e os mecanismos moleculares que explicam esse comportamento.
Na prática, isso significa que resultados aparentemente contraditórios podem ser investigados com hipóteses mais específicas. Se um candidato apresenta boa atividade in vitro, mas perde eficácia em modelos mais complexos, por exemplo, a investigação pode avançar além da hipótese de baixa permeabilidade. A identificação de transportadores envolvidos no efluxo, de sítios de ligação e de alterações conformacionais permite direcionar ensaios funcionais para verificar se a molécula está sendo reconhecida e expulsa pela célula. Da mesma forma, o conhecimento estrutural de canais e transportadores exclusivos de determinados patógenos abre possibilidades para o desenho de compostos mais seletivos.
Para equipes de desenvolvimento pré-clínico, o impacto está na qualidade das decisões tomadas ao longo da pesquisa: escolher quais mecanismos investigar, quais ensaios priorizar e quais modificações estruturais podem aumentar a eficácia ou a seletividade de um candidato. A crio-EM não substitui a experimentação funcional, mas oferece uma camada adicional de informação para tornar a investigação mais direcionada e reduzir o espaço de tentativa e erro.